 格物
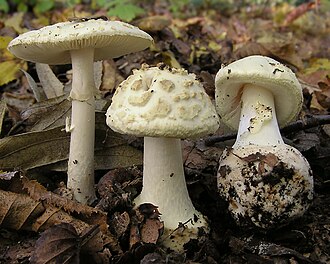
图:This image was created by user Andreas Gminder (mollisia) at… · CC BY-SA 3.0 · Wikimedia Commons
- 学名
- Fungi
- 分类等级
- 界
- 英文名
- fungi
- 上级类群
- 菌物总界
- 大类
- 真菌
- 命名
- 罗耶·摩尔,1980 年
- 数据库
- NCBI 分类 · GBIF
下级类群(11)


百科正文
真菌可与动物、植物或其他真菌产生互利共生或寄生等交互作用,例如与植物形成菌根、与藻类形成地衣、感染树木以致木材腐朽等。真菌对农作物的感染可破坏人类的食物供给和区域经济,但有些真菌可被用作生物农药以抑制杂草、植物疾病及害虫。部分真菌可产生对人类或其他动物有害的毒素,其中有少数被用于娱乐及宗教仪式上。有些蕈类可食用,还有些真菌是食品工业的要角,可以作为面包的膨松剂,或发酵制造酱油、豆腐乳与酒等食品。许多现代工业使用的酵素也是由真菌所合成。真菌与医疗卫生息息相关,有些真菌则会感染人类及其他动物致病,包括足癣等浅表层感染与隐球菌病等全身感染,严重时可能致死;有些真菌则可以合成抗生素与其他现代与传统医学的药物。此外在生物学研究中,真菌也常被用作模式生物。
真菌自成一界,在演化上是单系群,各门的物种形态、生态与生活史都有巨大差别。十八、十九世纪林奈、珀森及弗里斯等人为真菌分类学奠定基础,将真菌依宏观形态、微观构造或生理特征进行分类,但学界对真菌多样性了解仍少,据估计约有300万个物种,而目前已发表的仅有约15万种。研究真菌的学门称为真菌学,过去学者们曾因真菌和植物形态类似而将其视为植物学的分支,惟分子证据显示真菌和动物的关系要比和植物更加亲近,两者同属后鞭毛生物。二十世纪分子遗传学与生物技术的飞速发展下,DNA测序开始被广泛用于真菌分类,使传统分类系统受到一定程度的挑战。最近十几年来在系统发生学上的研究已多次改变人们对真菌分类的观点,也有原本不被认为是真菌的生物(微孢子虫、罗兹菌、核形虫)被归入真菌界或与其关系密切的类群中。各类群真菌的关系仍未有定论,为当今真菌研究的热点。
词源
英文及拉丁文
在英文里,真菌的单数是Fungus,复数是Fungi或Funguses。“fungus”直接源自于拉丁文对蘑菇的称呼,古罗马作家老普林尼与贺拉斯的作品中都有这个称呼,而拉丁文的“fungus”则是来自希腊文的海绵“σφογγος”(sphongos),因蘑菇与霉菌形态上的特征而得名。此一字根也出现其他欧洲语言中,例如德文意指霉菌的“Schimmel”也源于此字根。
真菌学是以科学方法研究真菌的学门,而真菌学的英文“mycology”则是直接来自希腊文中对蘑菇的称呼“μύκης”(mykes)。“mycology”的拉丁文型式(mycologicæ)最早于1796年出现于德国真菌学家克里斯蒂安·亨德里克·佩尔松的著作,英文型式则应是出现于英国自然学家迈尔士·约瑟·贝克莱1836年的著作。
特征
在分子系统发生学问世以前,分类学家一般认为真菌属于植物,这是因为真菌与植物有许多共同特征,例如两者皆不会移动,大致形态与栖地相似,真菌与植物都生长在土壤中,且部分真菌形成的产孢结构子实体外型与苔藓植物相当类似。现在真菌被认为是独立的一界生物,与植物与动物均不同,它们早在十亿年前(大约是新元古代)就在演化上与动物分家。真菌多数的特征都可见于其他生物中,因此很难找到某项特征为真菌独有而不存在其他生物中。真菌与其他生物共同拥有的特征如下:
与所有其他真核生物:真菌有细胞核,基因组中有大量非编码DNA,基因中也有内插子存在。真菌也具有许多有膜细胞器,包括线粒体、内质网、高尔基体等,且膜中含有固醇(但真菌膜中的固醇种类大多为麦角固醇,与动植物膜中的固醇种类不同)。
多样性
真菌广泛分布于全世界的各种栖地中,包括气候极端的环境如沙漠、深海以及受辐射污染的地区,有些种类对辐射的抗性很强,某些地衣甚至可以抵挡高强度的宇宙射线与紫外线,在人造卫星上的研究站存活。大多数真菌生长在陆地上,但有些真菌生活史的部分或全部阶段生长于水中,例如壶菌门真菌会产生在水中游动的动孢子以寻找两生类作为宿主,蛙壶菌对世界两生类多样性造成威胁。还有一些真菌生长在海洋中。
人们对于世界真菌多样性的了解仍相当有限,据估计真菌界共有约300万个物种,但目前被生物分类学家们正式记录与描述的真菌种类仅有约15万种。历史上有许多方法可以用来鉴定真菌物种,传统真菌学主要以孢子或子实体的大小、形状等形态上的特征分辨真菌,另一种鉴定物种的方法是通过生理与生化性质,即依真菌的化学测试的结果来分辨。
真菌学
真菌学是生物学的一个分支,研究真菌的遗传、生化性质、分类、对人类的用途(包括药用、食用与宗教致幻剂)以及对人类的威胁(包括毒性与感染)。因为许多植物病原是真菌,植物病理学的研究也常与真菌学高度相关。
真菌学是一门相对较新的科学,在十七世纪显微镜发明后才出现。早在1588年吉安巴蒂斯塔·德拉·波尔塔就发现了真菌的孢子,1665年罗伯特·虎克用自己设计的显微镜首次观察并描述了霉菌的微观结构,但他仍认为蕈类是一类繁殖方式不明的植物。而现代真菌学真正的起源一般认为是1729年意大利植物学家皮耶尔·安东尼奥·米凯利出版的《植物新属》,他除了观察到孢子之外,还发现在适当条件下孢子可以萌发,并生长成当初产生该孢子的同一种真菌,米凯利描述发表了超过900种真菌,其中包括宏观与微观的物种。
形态
微观结构
许多真菌以菌丝的形式生长,菌丝是直径2-10微米的圆柱体丝状结构,可长达数公分。菌丝一般自其顶端往前生长,新的菌丝形成通常是旧有菌丝的中间产生了一个新的生长点,而长出新的分支,也有些情况是生长中的菌丝顶端分岔成两条菌丝。菌丝成长后相互交错,成为真菌的营养构造菌丝体。菌丝可以是多核(无隔板)或是有隔板的,有隔板的菌丝不同细胞核间有细胞壁将其分隔,使一个隔间具有一或数个细胞核,多核菌丝则没有隔板,基本上就是一个含有多个细胞核的巨大细胞。隔板上通常有小孔可以使细胞质与细胞器流通,有时细胞核也可以通过小孔,例如担子菌门真菌形成的桶孔隔膜
生长与生理
真菌在固体介质中以菌丝形式生长,在水中则常以单细胞酵母菌形式生长,皆是为了提升表面积以增加吸收养分的效率。菌丝特别适合在固体介质上生长,且可以形成较大的穿透力而适于侵入新的固体介质,例如稻热病菌等植物病原菌特化出附着器的构造以穿透植物组织,压器可借由增加细胞中甘油等溶质的浓度以加大膨压,在植物表皮上产生高达1200psi的压力。淡紫拟青霉菌也用一种类似的结构来穿透线虫的卵。
绝大多数菌丝都只能自顶端往前生长,香柱菌属等部分内生真菌则是少见的例外,它们的菌丝附着于宿主细胞上,并可能因宿主细胞延长造成的机械拉力,而促使其菌丝从中间分裂生长(intercalary extension),以长至跟宿主的组织一样长度。另外担子菌子实体形成时,菌柄等大型器官的长成是菌丝体积膨大的结果。
繁殖
真菌的繁殖机制相当复杂,反映了此类生物生活史与遗传组成丰富的多样性。据统计有超过三分之一的真菌物种采用超过一种方式繁殖,例如无性时期产生无性孢子,有性时期又产生不同种类的有性孢子。不同的环境刺激可以启动特定基因表达,让真菌长出不同的特化结构以产生无性或有性孢子。
无性生殖
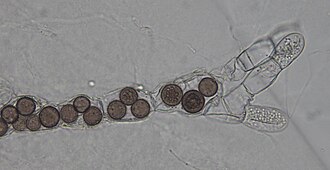
真菌的无性生殖有通过产生无性孢子与菌丝断裂(mycelial fragmentation)等机制,前者包括以孢子囊、分生孢子囊柄等特化的结构产生孢子,后者则是菌丝断裂成为许多片段,每一片段都长成一条新的菌丝。无性生殖可以产生基因上与母体相同、占据同样生态栖位的子代,繁殖效率也较有性生殖迅速,可以在短时间快速拓殖。不完全菌是一个旧时的分类名词,指未观察到有性世代的真菌,现在分类学上已不使用此名词,但仍可以用来泛指缺乏有性世代的真菌。
化石纪录
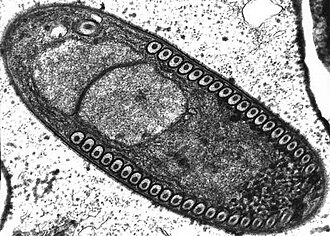
许多真菌结构是微观的,而主要的宏观结构如子实体又非常柔软且容易分解,因此与动植物相比,真菌的化石记录相当稀少,且真菌化石很难与其他微生物的化石分别,除非有现生真菌与化石物种外型相似才较易分辨。真菌的化石常与动植物的一起出现,通常经过薄切面后,使用光学显微镜或透射电子显微镜检视观察,研究压纹化石时则会使用酸性溶液将化石周围的底物溶解,再使用光学显微镜或扫描电子显微镜观察表面的详细构造。
最早具典型真菌特征的化石可追溯至24亿年前的古元古代,是栖息于海底的生物,含有可能可以互相接合的菌丝状构造。另有研究比较相关生物类群的演化速率,以分子钟推测真菌应该在7-10亿年前出现,加拿大出土距今距今9亿-10亿年的化石Ourasphaira giraldae可能即是真菌。
分类
真菌学在传统上常被划归在植物学的范畴中,但真菌其实与动物的亲缘更为接近。分类学家根据分子系统发生学的分析,将广义的真菌与动物(菌物总界与动物总界)共同组为称为后鞭毛生物的单系群,而真菌界本身也是一个单系群。真菌的分类经常有所变动,特别是DNA测序技术普及后,越来越多研究比较不同真菌间的DNA序列,不断提出新的分类观点。许多传统上以形态或交配实验所做出的分类系统受到相当大的挑战。此外同一种真菌还可能在生活史的不同阶段,例如无性与有性世代拥有数种不同的学名,使真菌分类更加复杂。目前有Index Fungorum与ITIS等数据库记录了所有现生真菌的名称(包含旧分类系统下的同物异名在内),许多分类学家也正努力建立更一致的命名系统。
生态
真菌存在于地球上几乎所有环境中,真菌与细菌同为许多生态系统中的分解者,在生物地球化学循环与食物链中扮演重要角色。真菌将有机物分解成二氧化碳释放,使碳元素重新回到食物链中,且作为腐生生物,真菌可将氮元素从有机物中分解释放,对氮循环不可或缺。
共生
真菌与许多生物都有交互作用,其关系包括互利共生、片利共生与寄生。
与植物
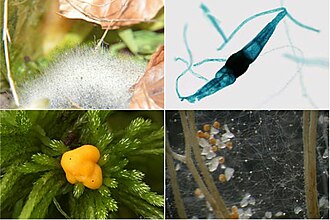
真菌与植物形成菌根的共生关系,对植物的生长与许多生态系统的维持都相当重要,超过九成的植物与真菌形成菌根,其中许多依赖菌根生存。菌根的演化历史十分古老,早在4亿年前就已出现,可以促进植物对硝酸盐与磷酸盐等关键无机盐的吸收,在无机盐浓度较低的土壤中尤为重要,而植物则将部分由光合作用合成的有机物提供给共生的真菌。
真菌毒素
真菌毒素泛指由真菌所合成、对动物或植物有毒的物质,其中对人类影响较大的包括霉菌在腐败的食物中产生的毒素,以及有毒蕈类的毒素,例如某些鹅膏菌属产生的毒伞肽。麦角胺是另一种在人类历史上相当重要的真菌毒素,食用被麦角菌污染的谷物会导致麦角中毒。黄曲毒素由某些能够感染谷物、坚果的曲霉属真菌合成,有很大的肝毒性与致癌性。其他包括赭曲霉毒素、展青霉素、伏马毒素都可能污染人或牲畜的食物而造成中毒。
真菌毒素是真菌的次级代谢物,许多真菌专门用于合成毒素的生化代谢路径已被发现,这些毒素可以抑制其他真菌生长或避免被食用而增加真菌自身的适应度。许多真菌的次级代谢物被用来当作药物,详见#人类利用一节的说明。
人类利用
人类真菌学是研究人类利用真菌的历史,以及真菌对人类社会影响的学门。人类对真菌的利用可以追溯到史前时代,早在5300年前的新石器时代,在奥地利阿尔卑斯山区发现的木乃伊冰人奥茨遗骸上便带有两种多孔菌,其中木蹄层孔菌可能是用来生火的燃料,白桦菌菇则可能是药用。古代人类常在不知情的状况下以真菌为食物来源,例如发酵面包与果汁的生产都有真菌参与。也有早期的手写记录描述作物遭到疑似为真菌的病原感染而破坏。
蕈类养殖与蕈类采集在现代许多国家都是重要产业。有多种真菌可以生产有生物活性的天然产物与抗生素,许多真菌已被开发以大量生产抗生素、维生素、抗癌药物或降低胆固醇的药物。
以上节选摘自维基百科「真菌」,按 CC BY-SA 4.0 使用,去掉了参考文献、外部链接等尾部小节,公式改写成了纯文本。篇幅所限,较长的小节只摘了开头一部分,有的小节没有收;全文、配图和出处见原文。