格物
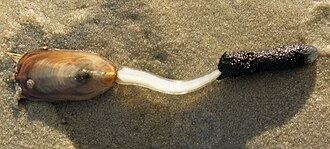
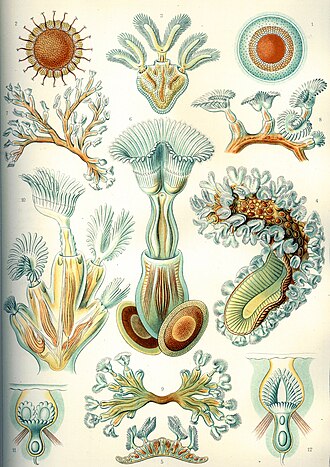
图:Wilson44691 · Public domain · Wikimedia Commons
生命之树 › 真核生物 › 动物界 › 真后生动物亚界 › 两侧对称动物 › 原口动物 › 螺旋动物
腕足动物门门
Brachiopoda
腕足动物门 是动物界的一个门,属于底栖、有一对硬壳的海生触手冠动物。但与双壳类软体动物不同的是:其壳是上、下开合,而不是左、右开合。铰位在后背部,而前方可开合作捕食或防御。它们自寒武纪开始演化,在古生代时期最为繁盛,物种多样性达到最高峰,大约发现了超过12000个化石种,但之后于古生代末期的二叠纪-三叠纪灭绝事件事件中大幅衰落,生态栖位被双壳类动物所取代。现存的腕足动物只有300种左右,且多分布在高纬度的弱光冷水海域。
摘自维基百科「腕足动物门」,CC BY-SA 4.0
- 学名
- Brachiopoda
- 分类等级
- 门
- 上级类群
- 螺旋动物
- 大类
- 其他动物
- 命名
- 安德烈·马里·康斯坦·迪梅里,1806 年
- 数据库
- NCBI 分类 · GBIF
下级类群(2)
百科正文
语源
腕足动物的学名brachiopod源于古希腊语,由“手臂”(βραχίων,brachion)与“足”(πούς,poús)两部分组成。因为最早的学者误以为其“腕”(brachion)为运动器官,相当于软体动物的“足”(podos)。然而腕足动物的腕实际上起的是呼吸和摄食作用,与身体运动无关。
解剖特征
壳体结构与功能
介壳两枚,主成分为几丁质、磷酸钙或碳酸钙等,壳体外形有圆形、长卵形、三角形、五角形、方形等,大小随物种不同差异很大,大多数物种的壳长约为10至30毫米。两瓣壳大小相等或不等,分别位于躯体的背、腹侧,大者称腹壳(ventral valve),由于壳后端有肉茎伸出的肉茎孔,故又称茎壳(pedicle valve);小者称背壳(dorsal valve),因腕附着其上,又称腕壳(brachial valve)。由于“背/腹壳”的术语表示方位,并且允许若干结构在个别属种的丢失,因而较“茎/腕壳”推荐。在个体发育过程中,腕足动物壳体的形成依赖一组高度保守的基因,包括同源框(homeobox)基因,而这些基因同样也参与了软体动物壳体的形成。
两壳前缘和侧缘相接的边界称为接合线(commissure),同接合线平行的平面称为接合面(commissural plane)。
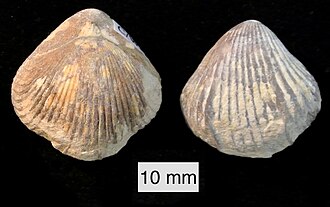
两壳铰合部位于壳体后方,两壳可向前方张开。两壳在壳后端均有向后方弯曲凸出的壳喙(beak)。有铰类腕足动物的两壳间有铰齿和铰槽,两壳铰合处为铰合线(hinge line),铰合线与壳喙之间的三角形壳面称为铰合面,套膜叶在壳背方连接,使两瓣壳不会错位,依靠简单的开合肌肉来使两壳铰合;而无铰类的两壳间没有铰齿和槽,套膜的两叶分开,故必须依靠一套较为复杂的肌肉系统来令两瓣壳保持对齐。有铰类的两瓣壳通常为凸形,表面带有放射状或/和同心状的壳纹、壳线、壳褶等,有的具壳刺;无铰类的外壳大多平坦而光滑,两壳大小和形状相似。外壳的形状和饰纹以及内部器官的构造是鉴定属种的重要依据。
肉茎
身体柔软、左右对称;大多数物种透过体内延伸出的圆柱形肉茎挖掘洞穴或固着在海底等坚硬的表面上,有些种类如无铰类的髑髅贝属和有铰类的Lacazella不具肉茎的构造;和苔藓虫及帚虫一样,腕足动物也有触手冠,它们的触手冠往往在壳内盘卷成U形、环状或螺旋状,称为“腕”(brachia),上生许多触手,腕足动物透过触手上的纤毛摆动产生水流,使其能够滤食水中的食物颗粒。一些有铰腕足动物具有腕骨(brachidium)的结构,是支撑触手冠的钙质构造。消化道呈U字形弯曲,有铰类和部分无铰类缺少肛门;具有体腔和后肾。
分类
腕足动物的分类有其独特的不同之处:腕足动物的现生物种与化石物种有着不同的特色。化石物种的外壳和触手冠在形态上表现出高度的多样性;而现生物种的外壳变化不大,反而其软体部分各有不同特征。因此,我们很难根据形态对腕足动物进行全面性的分类。此外,本门物种还经历了显著的趋同进化和逆转演化(较新的类群失去了原先在过渡类群上出现的特征,反而回复成原本只在较旧类群上才有的特征)。因此,有些腕足动物分类学家认为现时的研究仍然未成熟到可以把目级以上的分类做出具体的定义,建议只适宜地透过自底向上的方法,先确定物种的种属,然后再把他们分成组。然而,其他分类学家相信,腕足动物中某些形态特征的模式已足够稳定,可以依此作更高级别的分类,尽管不同学者可能对较高阶元的分类各有不同的看法。
传统上,腕足动物主要依照两瓣壳间铰齿和铰槽的有无而分为两个纲:有铰纲(Articulata)和无铰纲(Inarticulata)。现行较通用的分类法则还考虑了外壳成分、肉茎的有无以及其他形态学上的差异,将腕足动物门分为三个亚门。以下为现时较多人同意的分类法。
目
- 以下为腕足动物门以下的目:(已灭绝的分类单元以剑号(†)标记)
- 舌形贝型亚门(Linguliformea)
- 舌形贝纲(Lingulata)
- †顶孔贝目(Acrotretida,又名乳房贝目)
- 舌形贝目(Linguilida)
- †管洞贝目(Siphonotretida)
- †神父贝纲(Paterinata)
- †神父贝目(Paterinida)
- 髑髅贝型亚门(Craniiformea)
- 髑髅贝纲(Craniata,又名颅形贝纲)
- 髑髅贝目(Craniida,又名颅形贝目)
- †拟髑髅贝目(Craniopsida,又名拟颅形贝目)
- †三分贝目(Trimerellida)
- 小嘴贝型亚门(Rhynchonelliformea)
- 小嘴贝纲(Rhynchonellata)
- †原正形贝目(Protorthida)
- †正形贝目(Orthida)
- †五房贝目(Pentamerida)
- †无洞贝目(Atrypida)
- 小嘴贝目(Rhynchonellida)
- †石燕贝目(Spiriferida)
- †无窗贝目(Athyridida)
- †准石燕贝目(Spiriferinida)
- 穿孔贝目(Terebratulida)
- 鞘壳贝目(Thecideida)
- †扭月贝纲(Strophomenata)
- †扭月贝目(Strophomenida)
- †长身贝目(Productida)
- †毕灵贝目(Billingsellida)
- †直形贝目(Orthotetida)
- †奇里贝纲(Chileata)
- †奇里贝目(Chileida)
- †目 Dictyonellida
- †顾脱贝纲(Kutorginata)
- †顾脱贝目(Kutorginida)
- †小圆货贝纲(Obolellata)
- †小圆货贝目(Obolellida)
- †诺卡特贝目(Naukatida)
生态
分布与生境
所有腕足动物皆为海生,目前没有发现淡水种。大部分物种会避开水动力条件强的位置,而一般生活在岩石悬垂、裂隙和洞穴,大陆架的陡峭斜坡,以及深海海底。另外,也有一些有铰类会附着在海带上,或生长在潮间带中异常避风、受保护的地点。最小的现生腕足动物Gywnia只有约1mm长,生活在砾石颗粒之间。小嘴贝型类幼体只依靠卵黄供养,定居和发育都很快,因此往往局限分布于某一地区,形成致密的种群,密度可达每平方米数千个。幼体成体常常附着在更成熟个体的壳上。相对而言,无铰类幼体在定居前可游泳长达一个月,因此分布范围较广,如盘形类Pelagodiscus属成员即全球广布。
演化史
腕足动物早在寒武纪初期便已出现,最先出现的是无铰类的物种,有铰类随后不久也开始出现。在奥陶纪和志留纪时期,腕足动物适应了全球大多数的海洋环境,并且在浅海中数量特别多。腕足动物在古生代经历了多次大规模的辐射演化,成为古生代海洋中种群最丰富的滤食性动物和造礁动物之一,已发现5000多个属、超过12000个化石物种,是古生代地层中常见且重要的指准化石,某些地区的大片石灰岩地层和珊瑚礁沉积物便主要是由它们的贝壳所组成。
然而,经历了奥陶纪、泥盆纪和二叠纪三次大繁荣后,腕足动物的多样性在二叠纪—三叠纪灭绝事件中受到了毁灭性的打击,种类和数量发生断崖式的暴跌,从此以后再也没能恢复多样性,其原先的生态位大多被受大灭绝影响程度较低的双壳类软体动物所取代,腕足动物则被挤压到海洋生态系的边缘地带。如今,腕足动物门大约有330个已知的现生种,分属于100多个属,其中绝大多数为有铰类(如穿孔贝目)。
以上内容摘自维基百科「腕足动物门」,按 CC BY-SA 4.0 使用,去掉了参考文献、外部链接等尾部小节,公式改写成了纯文本。全文、配图和出处见原文。